氏名:矢部 富雄
岐阜大学 応用生物科学部 教授, 博士(農学)
1999年 東北大学 大学院農学研究科 農芸化学専攻 博士課程後期 修了
日本ロシュ(株)研修生、米国マサチューセッツ工科大学博士研究員、米国ハーバード大学客員研究員、(財)東京都神経科学総合研究所常勤流動研究員を経て、2004年 岐阜大学応用生物科学部 助手、2007年 同 准教授、2016年から同 教授。
食成分機能化学、糖質生化学が専門。日本食物繊維学会 学会賞 (2021年)
食物繊維は,整腸作用や血糖値・血中コレステロールの上昇抑制など多彩な生理機能をもつことが知られ,その多くは腸内細菌による発酵で生じる短鎖脂肪酸や,難消化性に由来する物理化学的作用によって説明されてきた。一方,水溶性食物繊維であるペクチンはヒトの消化酵素では分解されず,大腸での発酵に先立って小腸上皮と直接接触しうる。近年,このペクチンが小腸絨毛の形態を変化させ,上皮細胞の細胞外マトリックスや細胞表面分子と構造特異的に相互作用することが見いだされてきた。本稿では,ホモガラクツロナン主鎖とラムノガラクツロナン-I側鎖という異なる構造ドメインがそれぞれ異なる標的にはたらくという観点から,ペクチンと腸管上皮細胞との相互作用に関する知見を概説するとともに,ペクチンが上皮細胞に認識される「化学情報」としてはたらくという作業仮説を提唱したい。
食物繊維は,便通の改善のみならず,血中コレステロールや食後血糖値の上昇抑制,免疫機能の調節など,健康の維持に資する多彩な生理機能をもつことが知られている1,2。これらの機能の多くは,大腸に常在する腸内細菌による発酵で生じる短鎖脂肪酸を介した作用や,難消化性に由来する保水・粘性・吸着といった物理化学的作用によって説明されてきた1。一方で,これら二つの機序だけでは説明しきれない,食物繊維そのものが消化管上皮に直接はたらきかける経路の存在も指摘されてきた。
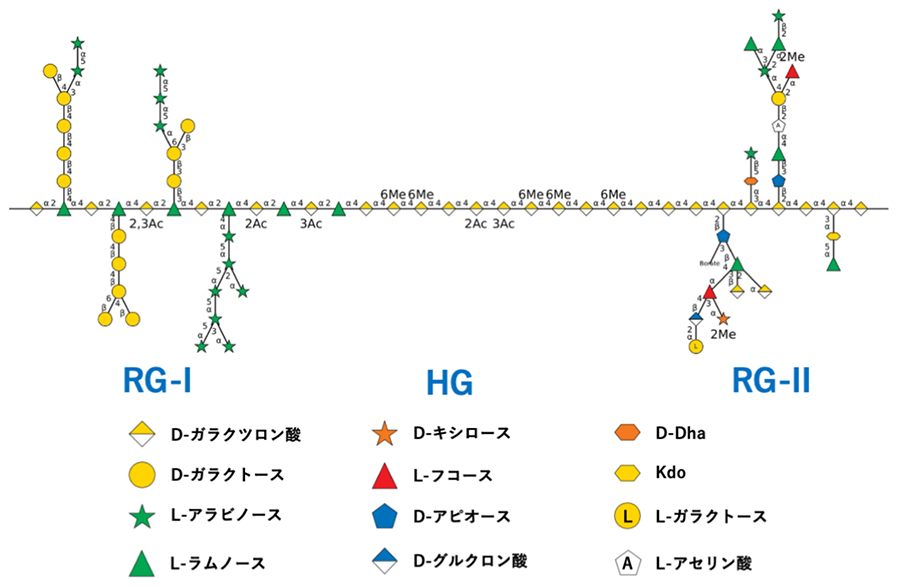
水溶性食物繊維の一種であるペクチンは,果実や野菜に豊富に含まれ,陸上植物の細胞壁を構成する主要な多糖の一つである。その基本骨格は,α-1,4結合した D-ガラクツロン酸が連なるホモガラクツロナン(homogalacturonan; HG)であり,カルボキシ基の一部はメチルエステル化を受けている3,4。これに加え,D-ガラクツロン酸と L-ラムノースが交互に連なる主鎖にガラクタン,アラビナン,アラビノガラクタンなどの中性糖側鎖が結合したラムノガラクツロナン-I(RG-I),および高度に分岐したラムノガラクツロナン-II(RG-II)が存在する3,4(図 1)。ペクチンの構造は植物種・組織・成熟度や抽出法によって大きく異なり,この多様性が構造機能相関の解明を難しくしている5。各構造の詳細については優れた総説を参照されたい3-5。
ペクチンはヒトの消化酵素では分解されず,小腸を通過して大腸に達し,そこで腸内細菌によってほぼ完全に発酵に利用される6。しかし,ペクチンの発酵は主に回腸末端以降で本格化するため,それに先立ってペクチンは小腸上皮と直接接触しうる7。実際,ペクチンの摂取が小腸絨毛の伸長や陰窩の分岐といった形態変化を誘導することが古くから報告されており8,9,この変化が腸内細菌の存在しない条件でも生じることから9,発酵に依存しない直接的な経路の存在が支持されている。さらに,ペクチンが消化管に関連する細胞表面のレクチン受容体やパターン認識受容体に結合し,抗炎症・免疫調節作用を示すという報告もあり7,10,11,ペクチンが上皮の分子と相互作用する「リガンド」としてはたらく可能性が議論されてきた。
しかしながら,ペクチンが小腸上皮細胞のどの分子に,どの構造部位を介して作用するのか,その分子機構と生理的意義は長く不明であった。私たちは,腸管絨毛に吸収されることのない水溶性食物繊維と腸管上皮との相互作用に着目し,その作用機序を検討してきた。本稿ではまず,ペクチンが小腸上皮の形態を変化させる現象とその分子機構を概説し(第2節,第3節),次いで,ペクチンの主鎖である HG が細胞外マトリックスタンパク質フィブロネクチンとインテグリンβ1 の相互作用に及ぼす影響を述べる(第4節)。そのうえで,HG 主鎖と RG-I 側鎖という異なる構造ドメインがそれぞれ異なる上皮分子にはたらくという構造特異性の観点から,これらの知見を統合し,作業仮説を提示したい(第5節)
ペクチンが小腸の形態を変化させること自体は古くから知られている。げっ歯類にペクチンを比較的高用量(飼料の1〜10%程度)で与えると,小腸絨毛の伸長や陰窩の分岐・増生が観察される8,9,12,13。小腸上皮は,陰窩底部の腸管幹細胞(intestinal stem cell; ISC)が自己複製しつつ娘細胞を生み,それらが増殖・分化しながら絨毛先端へと移動することで,数日周期で絶えず更新される組織である14。したがって絨毛の伸長は,幹細胞・前駆細胞の増殖や分化のバランスが変化した結果として理解される。ペクチンによるこうした形態変化が腸内細菌の存在しない条件でも生じること9,および培養腸管上皮細胞との直接接触が細胞増殖を促すこと(第3節)から,ペクチンは上皮そのものに直接はたらきかけていると考えられる。
ここで問題となるのは,ペクチンのどの構造部位がこの作用を担うかである。私たちは,カキ(Diospyros kaki)由来ペクチンの RG-I 側鎖に含まれるアラビノガラクタンが,小腸上皮細胞との相互作用に関与することを見いだした15。すなわち,HG 主鎖ではなく中性糖側鎖が,形態変化の活性部位の候補となる。
この点を in vivo で検討するため,私たちはまず老化促進モデルである senescence-accelerated mouse prone 8(SAMP8)マウスにカキ由来ペクチンを与えた16。その結果,老齢 SAMP8 マウスでは絨毛長そのものに大きな変化はみられなかったが,ペクチン食(10%)により小腸中央部の絨毛がわずかに伸長した。より明瞭であったのは幹細胞活性への影響であり,ペクチン食群ではパネート細胞マーカー Lyz1 と活発に増殖する ISC のマーカー Olfm4 の発現が増加し,摘出した陰窩から作製した腸管オルガノイドはより多くの分岐(lobe)を形成した。これらは,ペクチンが ISC の再生能を高めることを示唆する16,17。ただし本研究では,SAMP8 マウスの加齢自体は栄養吸収不全を伴わず,加齢に伴う吸収不全のモデルとしては必ずしも適さないことも明らかになった16。
次に,側鎖の生理的意義をより直接的に評価するため,主鎖をペクチナーゼで分解して調製したユズ(Citrus junos)ペクチン側鎖(RG-I 画分)を,低タンパク質飼料で軽度の栄養失調を誘導したマウス(protein-deficient; PD)に飲水投与した18。その結果,ユズペクチン側鎖(高用量群)は空腸絨毛を有意に伸長させ,ペクチン側鎖が PD 状態下で in vivo に絨毛を伸長させうることを初めて示した。一方で,体重減少そのものは回復せず,栄養失調を完全に改善するには至らなかった(部分的な有効性)。遺伝子発現解析では,ユズペクチン側鎖が十二指腸の糖輸送体 Glut2 やスクラーゼ・イソマルターゼ複合体 Si の発現を低下させ,糖の利用を抑制する傾向を示した。さらに,PD で亢進していた肝脂質の蓄積を抑制した。これらは,ペクチン側鎖が絨毛形態の変化を介して栄養吸収のパターンを再編成しうることを示す一方で,絨毛の伸長と個々の栄養素の吸収とが必ずしも一致しないことも同時に示している18。
以上の知見は,ペクチンの RG-I 側鎖が小腸上皮の形態と ISC 活性に作用する活性部位でありうること,そしてその作用が高齢者の低栄養予防といった生理的文脈で意義をもちうることを示唆する19。ただし,これらはいずれも現象レベルの観察であり,側鎖の情報が上皮細胞でどのように受容され,幹細胞の増殖へと伝わるのかという分子機構は,これだけでは説明できない。次節では,この機構を in vitro の解析から述べる。
前節の現象を分子レベルで理解するため,私たちはヒト結腸がん由来の Caco-2 細胞を用いた。Caco-2 細胞は分化させると小腸の吸収上皮細胞に類似した形態と機能を示すため,小腸上皮の in vitro モデルとして広く用いられている。着目したのは細胞表面のヘパラン硫酸(heparan sulfate; HS)である。HS は,すべての動物細胞の表面と細胞外マトリックスに存在するグリコサミノグリカンの一種として知られる硫酸化多糖で,その硫酸化パターンによって多様な構造をとり,Wnt や線維芽細胞増殖因子などのリガンドの共受容体としてはたらく20。小腸においても,上皮細胞表面の HS が Wnt シグナルを介して陰窩の恒常性を制御することが知られている21。
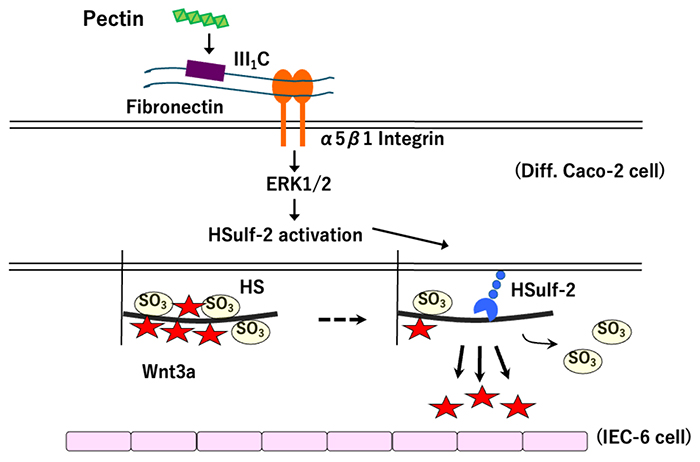
私たちはまず,プルーン(Prunus domestica L.)由来ペクチンを分化 Caco-2 細胞に作用させると,細胞表面 HS の二糖組成(硫酸化構造)が顕著に変化することを見いだした22。すなわち,非硫酸化二糖の割合が増し,6-O-硫酸基をもつ二糖が減少した。この変化は,細胞表面で HS の 6-O-硫酸基を除去する酵素であるヒト HS 6-O-エンドスルファターゼ-2(HSulf-2)の発現上昇と,HSulf-1 の発現低下を伴っていた。さらに,ペクチンをフィブロネクチン(fibronectin; FN)の III1-C 断片(FN-III1C)とあらかじめ混合しておくか,細胞を RGD ペプチドで処理しておくと,この HSulf-2 の誘導が抑えられた。またペクチン刺激により細胞外シグナル制御キナーゼ ERK1/2 が一過的にリン酸化され(刺激後5分で最大),ERK1/2 阻害剤は HSulf-2 の誘導を抑制した。これらの結果は,ペクチンが FN と α5β1 インテグリンを介して ERK1/2 を活性化し,HSulf-2 の発現を通じて HS の硫酸化構造を変化させることを示唆する22。なお本研究では,ペクチンが FN-III1C に結合するという予備的知見も得られており,この直接結合の分子論的な裏づけは第4節で述べる。
次に,この HS 構造変化の生物学的意義を,分化 Caco-2 細胞(上皮モデル)とラット IEC-6 細胞(陰窩細胞モデル)の共培養系で検討した23。ペクチンで処理した Caco-2 細胞は,基底膜側へ何らかの増殖因子を分泌し,IEC-6 細胞の増殖を濃度依存的に促した。ペクチンは Caco-2 細胞において Wnt3a の発現(mRNA・タンパク質)を高める一方,構造変化を受けた HS は Wnt3a との結合が著しく低下していた。すなわちペクチンは,HS の硫酸化構造を変化させて HS–Wnt3a 間の親和性を下げることで,Caco-2 細胞からの Wnt3a 分泌を促すと考えられる。Wnt3a は陰窩で幹細胞のニッチを形成するパネート細胞などから分泌され,幹細胞・前駆細胞の増殖を支える因子である24。HS の 6-O-脱硫酸化が Wnt との結合を弱めてシグナルを調節するという考えは,他の系での知見とも整合する25。
以上を総合すると,ペクチンが小腸絨毛の形態を変える作用は,「ペクチン → FN・α5β1 インテグリン → ERK1/2 → HSulf-2 による HS の脱6-O-硫酸化 → Wnt3a の遊離 → 陰窩細胞の増殖」という経路で説明できる可能性がある(図 2)。これは,第2節で述べた in vivo の絨毛伸長や ISC 活性の亢進と分子レベルでつながりうる作業仮説である。一方で,これらは結腸がん由来細胞を用いた in vitro の所見であること,および FN とインテグリンの関与が主に阻害実験と予備的な結合データから推定されたものであることには留意が必要である。そこで次節では,ペクチンが FN に実際にどのように結合し,それが FN とインテグリンの相互作用に何をもたらすのかを,分子間相互作用解析により直接検討した結果を述べる。
前節で述べたように,ペクチンの作用には FN と α5β1 インテグリンの関与が示唆されたが,それは主に阻害実験と予備的な結合データに基づく推定であった。FN は,I 型・II 型・III 型の三種類のモジュールが連なってできた巨大な細胞外マトリックス糖タンパク質で,細胞接着・遊走・増殖の足場として中心的な役割を果たす26。細胞は,インテグリン α5β1 を介してFN の III10モジュール上にある RGD 配列を認識し,FNのIII9 モジュールに存在する相乗配列による結合増強を受けて,FN に接着する27。そこで私たちは,ペクチンが実際に FN のどこに結合し,それが FN とインテグリンの相互作用に何をもたらすのかを,分子間相互作用解析によって直接検討した28。
このとき鍵となるのは,ペクチンの構造を分けて評価することである。私たちは市販ペクチンから構造の異なる4種の水溶性ペクチン(water-soluble pectin; WSP)を調製した28。すなわち,ウロン酸を約88%含み中性糖をほとんど含まない,メチルエステル化された HG 主鎖からなる Citrus WSP,それを脱メチルエステル化したペクチン酸(PE Citrus WSP),および主鎖を酵素分解して中性糖側鎖(RG-I)を富化したカキ由来 Kaki WSP とユズ由来 Yuzu WSP である。表面プラズモン共鳴(surface plasmon resonance; SPR)法でこれらと FN 断片との結合を解析したところ,メチルエステル化 HG 主鎖からなる Citrus WSP が FN の type III モジュール(FN-III1C )に明瞭に結合した(解離定数 KD は10-7〜10-8 M 程度)のに対し,RG-I 側鎖である Kaki・Yuzu WSP の結合は弱いか,ほとんど検出されなかった。さらに Citrus WSP を脱メチルエステル化すると,FN への結合は低下した。これらは,ペクチンの中でもメチルエステル化された HG 主鎖が FN type III モジュールに優先的に結合するという構造特異性を示している。Citrus WSP は細胞接着ドメインを含む FN 断片にも結合したことから,FN type III モジュールの複数部位に結合すると考えられる。
次に,この結合が FN とインテグリンの相互作用に及ぼす影響を調べた。Citrus WSP はインテグリン α5β1 そのものにはほとんど直接結合しなかった。一方,プレートに吸着させた FN に,インテグリンβ1 の模倣プローブ(FN-III10 の細胞接着ドメインを認識する抗 FN 抗体 HFN7.1)を結合させる系(ELISA)では,Citrus WSP が濃度依存的に抗体の結合を低下させた[28]。曲線解析では,結合の親和性は変えずに最大結合量に相当する係数のみが低下したことから,ペクチンは RGD 配列を競合的に塞ぐのではなく,FN 上で露出した細胞接着部位の数を実質的に減らしていると解釈された。低メチルエステル化のポリガラクツロン酸やヘパリンにも同様の撹乱作用が認められ,この撹乱は FN が溶液中にあるときよりも吸着しているときに顕著であった。
これらの結果から,メチルエステル化 HG 主鎖は,おそらく疎水的な相互作用を介して FN の type III モジュールに結合し,FN の構造や細胞接着部位の露出を変化させることで,FN–インテグリンβ1 結合を撹乱すると考えられる(脱メチルエステル化体では,露出したカルボキシ基がヘパリン結合部位に静電的に結合する可能性がある)。ペクチン,とくに低メチルエステル化のものは粘液層を透過して上皮細胞に接触しうるため29,こうした撹乱は生体内でも起こりうる。ここで重要なのは,形態変化に関わる RG-I 側鎖(第2節,第3節)とは対照的に,FN–インテグリン軸にはたらくのは HG 主鎖であるという点であり,ペクチンの異なる構造ドメインが異なる上皮分子を標的とすることを示している。なお,本節の「FN–インテグリン結合の撹乱」は,第3節で述べた「ペクチンが FN・インテグリンを介してシグナルを活性化する」という所見と一見相反するようにもみえる。この見かけの矛盾の解釈は,次節で構造特異性の観点から整理する。
本稿で概説した知見は,「ペクチンの異なる構造ドメインが,小腸上皮の異なる分子を標的とする」という一つの像にまとめられる。RG-I の中性糖側鎖(アラビナン・ガラクタン・アラビノガラクタン)は,小腸絨毛の形態変化と腸管幹細胞の活性に関わり(第2節),その作用は,FN・α5β1 インテグリン・ERK1/2 を介した HS の硫酸化構造の改変と,それに伴う Wnt3a の遊離によって説明されうる(第3節)。一方,HG 主鎖,とりわけメチルエステル化された主鎖は,FN の type III モジュールに結合して FN–インテグリンβ1 結合を撹乱する(第4節)。側鎖構造に依存した生理機能は形態変化に限らず,たとえばペクチンによる実験的大腸炎の改善が中性糖側鎖に依存して起こることも報告されており30,「構造ドメインごとに異なる機能」という見方を支持している。
ただし,この統合像には正面から向き合うべき論点がある。第3節の機構はペクチンが FN・インテグリンを介してシグナルを活性化することを示唆するのに対し,第4節は HG 主鎖が FN–インテグリンβ1 結合を撹乱することを示しており,両者は一見相反する。この見かけの相違には,いくつかの可能性が考えられる。第一に,用いたペクチンの構造の違いである(第3節はプルーン由来の精製画分,第4節は構造を規定した Citrus HG)。第二に,FN の状態の違いである。撹乱作用は FN が溶液中にあるときよりマトリックスに吸着したときに顕著であり,生体内では FN は可溶型とマトリックス組み込み型の両方で存在する。第三に,観察している現象そのものが異なる(細胞内シグナルの誘導か,抗体・インテグリンの結合量か)。ペクチンの結合が FN の構造や集合状態を変えることで,文脈によっては接着を妨げ,別の文脈ではシグナルを引き起こすという両義的なはたらきも想定されるが,現時点でこれらを一つの機構に統一することはできず,今後の検証課題である。
さらに根本的な問いとして,これらの相互作用が生体内のどこで起こるのかがある。FN とインテグリンは通常,上皮細胞の基底膜側に局在するため,管腔側を通過するペクチンがそれらに接触しうるのか,すなわち管腔側に機能的な FN・インテグリンが存在するのかは,まだ明らかでない。あわせて,各ドメインの最小活性単位の同定,細胞モデルを超えた生体内での分子機構の直接的な証明,そして二つのドメインの作用が独立なのか協調的なのかの解明が必要である。本稿で示した機構の多くが,ヒト結腸がん由来細胞を用いた in vitro の所見と推定に基づく点にも,引き続き留意する必要がある。
これらの留保を踏まえたうえで,私たちは次の作業仮説を提唱したい。すなわち,ペクチンは栄養素として吸収されることのない食品成分でありながら,その構造ドメインごとに小腸上皮細胞に認識される「化学情報」としてはたらき,HG 主鎖は FN–インテグリンという細胞接着の要に,RG-I 側鎖は絨毛形態と幹細胞の活性に作用することで,上皮の恒常性を調節している,という仮説である。この見方が正しければ,構造を規定したペクチンは,高齢者の低栄養の予防や腸管バリア・上皮再生の制御を目指した機能性食品素材の設計指針となりうると期待される。実際,FN とインテグリンの結合特異性を制御して細胞応答を導く試みも提案されており31,ペクチンの構造特異的相互作用の理解は,食物繊維を「なぜ・どのように」摂るのかという問いに,分子の言葉で答える一助となるだろう。