氏名:松尾 一郎
群馬大学大学院理工学府 物質・環境部門 応用化学プログラム 教授
1992年、横浜市立大学大学院総合理学研究科修士課程修了(理学、指導教員:榊原 徹教授)。同年4月、明治乳業株式会社に入社、ヘルスサイエンス研究所第6研究室にて、鯵坂勝美博士の指導のもと糖鎖研究に従事。1992年10月より1年間、理化学研究所細胞制御化学研究室(小川智也主任研究員)にて国内留学を行う。1998年、東京大学大学院農学系研究科にて博士(農学)の学位を取得。2000年4月より東京大学農学部微生物学研究室(北本勝ひこ教授)にて国内留学(1年間)を経験したのち、2001年より理化学研究所細胞制御化学研究室(伊藤幸成主任研究員)の研究員を務める。2008年、群馬大学大学院工学研究科教授に就任。2015年、群馬大学大学院理工学府分子科学部門教授、2025年より現職。
氏名:石井 希実
群馬大学大学院理工学府 物質・環境部門(応用化学プログラム) 助教
2018年3月に群馬大学大学院 理工学府 物質・生命理工学領域 博士後期課程を修了(博士(理工学)指導教官: 松尾一郎教授)。2018年4月から2020年8月までカンタベリー大学(ニュージーランド)博士研究員(Antony J. Fairbanks教授)。2020年9月から現職。
エンド-β-N-アセチルグルコサミニダーゼ(ENGase)は、アスパラギン結合型糖鎖(N-型糖鎖)のN,N-ジアセチルキトビオース構造に作用し、β1-4グリコシド結合を切断するエンド型の糖加水分解酵素である。糖タンパク質上のN-結合型糖鎖を切り出すことができるため、糖鎖構造を解析するための研究ツールとして利用されている。また、ENGaseは、糖タンパク質上の糖鎖リモデリングにも利用可能であり、創薬研究への応用が進められるなど、産業上も有用な酵素である。ENGase研究を進める上で、ENGaseの糖加水分解活性を簡便に検出する手法は必要不可欠であるが、ENGaseの活性検出法の多くは煩雑な操作が必要であった。本稿では、糖鎖の化学合成を基盤として、ENGase活性を簡便に検出するための「切れたら光る糖鎖分子プローブ」の開発について紹介する。
ENGaseはアスパラギン結合型糖鎖のキトビオース部分を切断するため、活性検出には糖タンパク質や糖ペプチド、蛍光標識した糖鎖が基質として使われる。糖タンパク質を基質とする場合は、RNase Bやフェツイン、抗体など、タンパク質上の糖鎖構造が明らかになっている糖タンパク質に対してENGaseを作用させ、糖鎖切断に伴うタンパク質の分子量変化をSDS-PAGEにより解析する。これらの糖タンパク質に対する感受性により基質特異性も評価することができる。しかし、糖タンパク質上の糖鎖構造には多様性があるため、糖鎖構造の多様性に起因する曖昧さを払拭することはできない。
蛍光標識した糖ペプチドを基質としてENGaseによる糖鎖の切断をHPLCや質量分析法により検出する方法は、糖鎖構造の均一性を担保するとともに、高感度で酵素活性を検出することができる1-4。しかし、糖タンパク質や糖ペプチドを基質として用いる場合は、ペプチド:N-グリカナーゼ(PNGase)と基質が競合するため、細胞質画分などを用いる解析の際にはENGase活性のみを検出しているか注意を払う必要がある。
糖鎖の還元末端部分をピリジルアミノ化法などにより蛍光標識を施した糖鎖ライブラリを基質として、HPLCによりENGase活性を検出する方法では、ENGase処理後の蛍光標識糖鎖のプロファイルの差異から、基質特異性が推定できる。これら還元アミノ化法により標識した糖鎖は、還元末端部分が開環しているためPNGaseの基質にはならずENGase活性のみを検出できるメリットがある。しかし、糖鎖還元末端部分の環状構造を認識するENGaseもあるため、基質特異性の評価には注意が必要である。
いずれにしても、これらのENGase活性検出には、SDSーPAGEやHPLCなどの煩雑な操作が必要であり、スループット性が低く、さらにENGase活性のみをリアルタイムにモニターすることができない。
糖加水分解酵素の活性を検出する基質の多くはキットとして市販され、簡便で容易に酵素実験を行うことができる。しかし、ENGaseには、酵素活性を簡便に検出するキットは市販されていなかった。したがって、ENGaseが基質を切断すると同時に、蛍光などが生じる糖鎖分子プローブを開発すれば、ENGaseの糖加水分解活性を簡便かつ定量的に検出でき、さらにマイクロプレートリーダーなどにより、多サンプルを、リアルタイムで酵素活性を検出することが可能となり、新規ENGaseの探索や基質特異性を改変したENGase改変体の創成、ENGase阻害剤の探索など、ENGase研究を加速すると考えた。
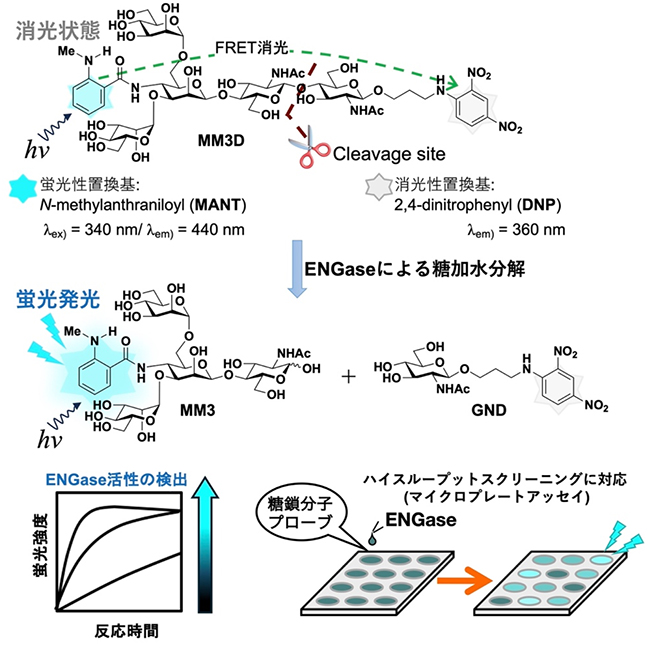
そこで我々は、Förster resonance energy transfer(FRET)消光の解消を作動原理とした糖鎖分子プローブの開発を行った。FRET消光型のプローブのコンセプトを図 1に示す。FRETとは近接した2個の色素分子の間で、ドナー分子の励起エネルギーがアクセプター分子に無放射遷移する現象である。したがって、ENGaseの基質となる糖鎖残基中にドナー分子としての蛍光基とアクセプター分子としての消光基を近接した位置に導入した分子を化学合成すれば、励起された蛍光基のエネルギーは消光基へと移動するためこの分子の蛍光は検出されない(光らない)。しかし、ENGaseによってグリコシド結合が切断されることで、分子内FRET消光が解消するため、蛍光基は消光されない(光る)。そのため、酵素反応の進行に伴い蛍光強度が増加することとなり、この蛍光強度の増加を検出することでENGaseの糖加水分解活性をリアルタイムに検出することが可能となる。具体的には、FRET色素分子としては、立体障害の影響を考慮して分子サイズが小さいN-メチルアントラニル基(MANT)を、消光性置換基としては2,4-ジニトロフェニル基(DNP)を選択した。糖鎖の構造は、すべてのアスパラギン結合型糖鎖に共通して存在するコア5糖構造とし、ENGaseによって切断されるキトビオース部位を挟んで、非還元末端部分に蛍光基を、還元末端部分にアミノプロピル基を介して消光基を導入することとした5。
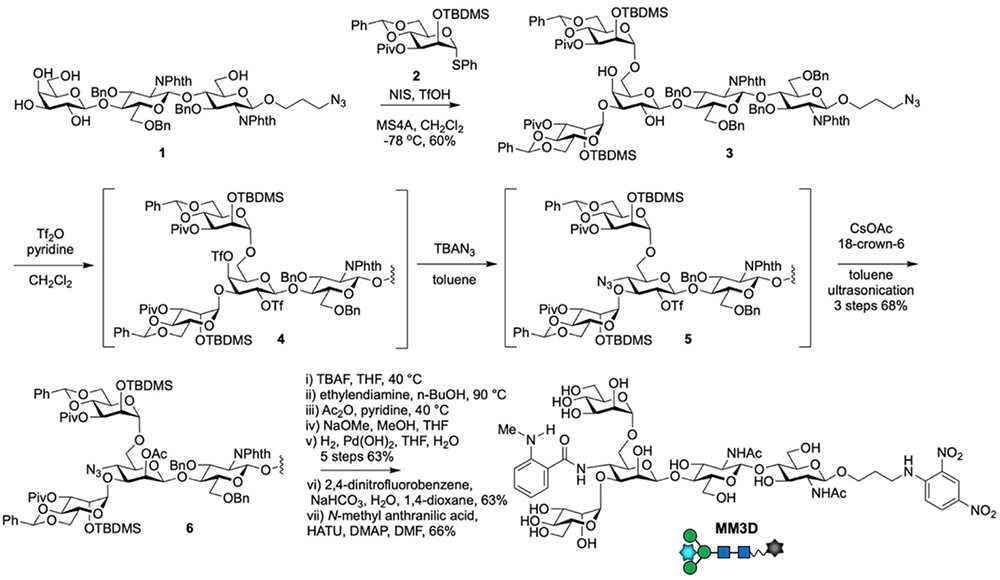
5糖構造を有するFRET消光型基質MM3Dの合成ルートをスキーム 1に示す。我々はβ-マンノース残基の構築を、β-ガラクトース残基の2位と4位のヒドロキシ基の立体反転により構築している6。その理由として、1)ガラクトース残基上の3位と6位のヒドロキシ基の反応性が高く、1段階のグリコシル化反応で分岐構造が構築できること、2)ガラクトース残基の2位と4位のヒドロキシ基に対して導入した脱離基(トリフラート基(Tf))は、4位のTf基の反応性が高く、選択的にアジド基の導入が可能であること、3)その後のC−2位のヒドロキシ基の立体反転により、β-マンノース残基へと導けるため、化学的に立体選択的構築が困難なβ-マンノシル化反応を回避できるからである。すなわち、3糖受容体1に対して、マンノース供与体2を反応することで、1段階で分岐の5糖骨格を構築、5糖3へと導き、得られた3のガラクトース残基の2位と4位をTf化することでジトリフレート体4とした。その後、ジトリフレート体4をトルエン中、室温下でテトラブチルアンモニウムアジド(TBAN3)と反応させることで4位にのみがアジド化されたモノトリフレート体5とし、抽出操作により過剰のTBAN3を除去した後に、超音波条件下、CsOAc・クラウンエーテルにて処理することで、望む立体化学を有する5糖6を、3段階収率68%で得た。得られた5糖6の保護基を除去、ジアミノ体とした後に、アミノ基の反応性の差を利用して、還元末端部分のアミノプロピル基に対してDNP基を導入、続いて非還元末端部分のアミノ基に対してMANT基を導入することで5糖プローブMM3Dへと導いた。
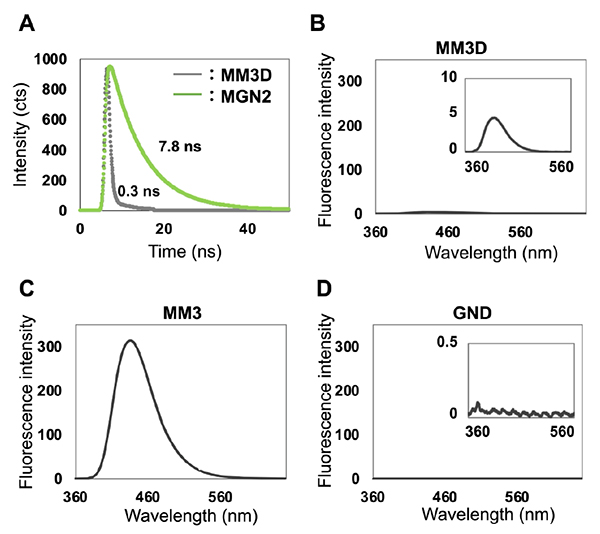
次に、MM3DがFRET消光の解消を作動原理とした糖鎖分子プローブとして機能するか、MANT基の蛍光寿命を測定することで確認した。MANT基のみを有するキトビオース誘導体MGN2の蛍光寿命が7.8 nsなのに対し、MM3D上のMANT基の蛍光寿命は0.3 nsであり、MANT基の蛍光は、DNP基によって、有意に消光されていることが確認された(図 2A)。一方、ENGaseによりMM3Dが完全に切断された時に生じると予想される4糖MM3の蛍光強度とMM3Dを比べると、MM3の蛍光強度が約50倍高いことから、酵素反応の追跡には十分であると判断した(図 2B,C)。さらにN-アセチルグルコサミン誘導体GND中のDNP基は蛍光を発しないこと(図 2D)、また、MM3DおよびMM3、GNDの分子間での消光は起こらないことも合わせて確認した5。
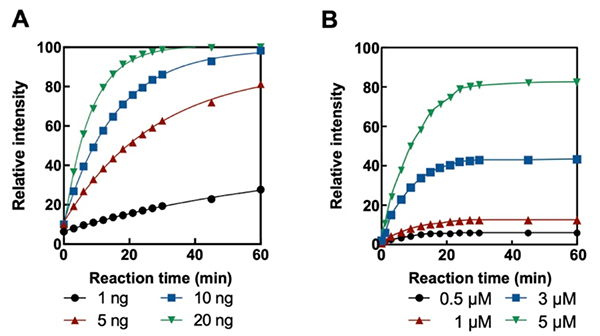
5糖プローブMM3DのFRET消光が確認できたので、ENGaseの基質となるか、Mucor hiemalis由来のEndo-M7を用いて確認した。MM3Dの濃度を5 μMに固定し、異なる酵素量の条件下で、励起波長λex.: 340 nm、蛍光波長 λem.: 440 nmとして、マイクロプレートリーダーを用いて酵素反応を追跡した。その結果、いずれの酵素濃度においても反応開始直後に比べて440 nmの蛍光強度が時間経過とともに上昇することを確認した。また、その蛍光強度の上昇速度は、酵素量に依存していたことより、MM3Dを用いてEndo-Mの酵素反応をモニターできると結論づけた(図 3A)。なお、反応液をHPLCにて解析した結果、反応時間の経過とともにMM3Dのピークが減少し、別途化学合成した4糖MM3と単糖GNDに相当するピークが観測された。さらに反応液のLCMS分析においても、MM3とGNDの分子量に相当する分子イオンピークが観測されたことより、EndoーMは、MM3Dのキトビオース部分のグリコシド結合を切断していることを確認した。また、プローブ濃度を検討した結果、プローブ濃度が0.5 μMでも酵素反応を十分追跡でき、高感度かつ定量的に酵素反応をモニターできることを確認した(図 3B)。
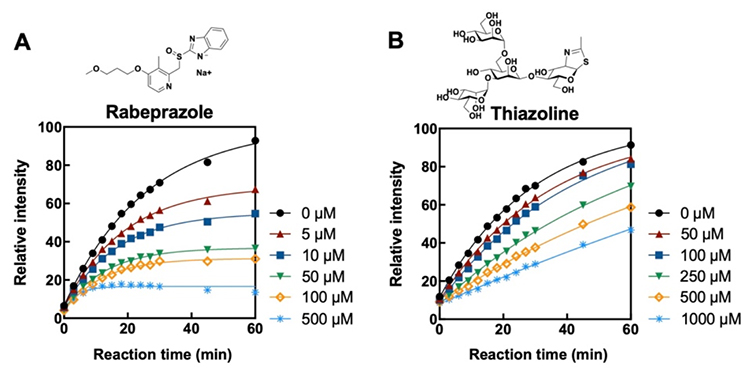
続いて、MM3Dを用いてENGaseの阻害剤の評価ができるか確認した。すなわち、NGLY1病に関連するヒトENGaseの阻害活性を有するRabeprazol8やENGaseに対する阻害活性が確認されているThiazoline9共存下、Endo-MによるMM3Dの分解反応を評価した。その結果、RabeprazoleおよびThiazolineの濃度依存的に酵素反応の進行が遅くなることが確認され(図 4)、MM3Dを用いたENGaseの評価系により、阻害剤の探索が可能なことが示された。
なお、我々が開発したMM3Dは、東京化成工業より販売されており、現在は、誰でも簡便にENGaseの活性測定が可能となっている10。
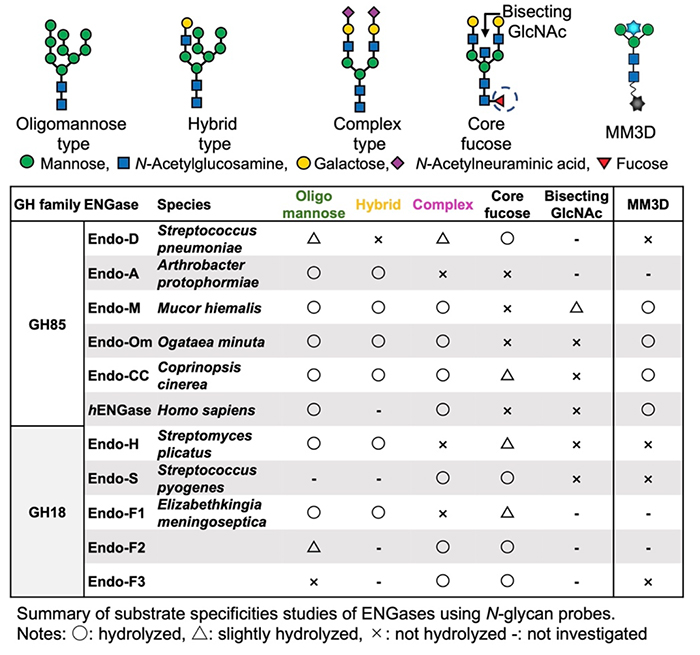
MM3Dは、すべてのENGaseが切断するN-型糖鎖の共通コア構造を有しており、ENGaseに対応したユニバーサルな基質になると期待して、MM3Dを用いて、由来の異なるENGaseの活性検出を試みた。ENGaseとしては、GH85ファミリーのStreptococcus pneumoniae由来のEndo-D11、Ogataea minuta由来のEndo-Om12、Coprinopsis cinerea由来のEndo-CC13、ヒト由来のENGase14、GH18ファミリーのStreptomyces plicatus由来のEndo-H15、Flavobacterium meningosepticum由来のEndo-F316、およびStreptococcus pyogenes由来のEndo-S17を用いた。表 1に、これまでに報告されているENGaseの基質特異性とともに、MM3DによりこれらのENGaseを評価した結果を示した。MM3Dは、Endo-M、Endo-CC、Endo-Om、およびヒト由来のENGaseの基質となり、活性を検出できたが、Endo-DやEndo-H、Endo-S、Endo-F3の活性を検出することはできなかった。Endo-Dは、コア5糖を基質とすることが知られており、我々も蛍光基を導入する前のコア5糖を基質となることを確認している。したがって、Endo-Dの基質にならなかったのは、β-マンノース残基のC-4位に導入した蛍光基の摂動によるものと確認された。
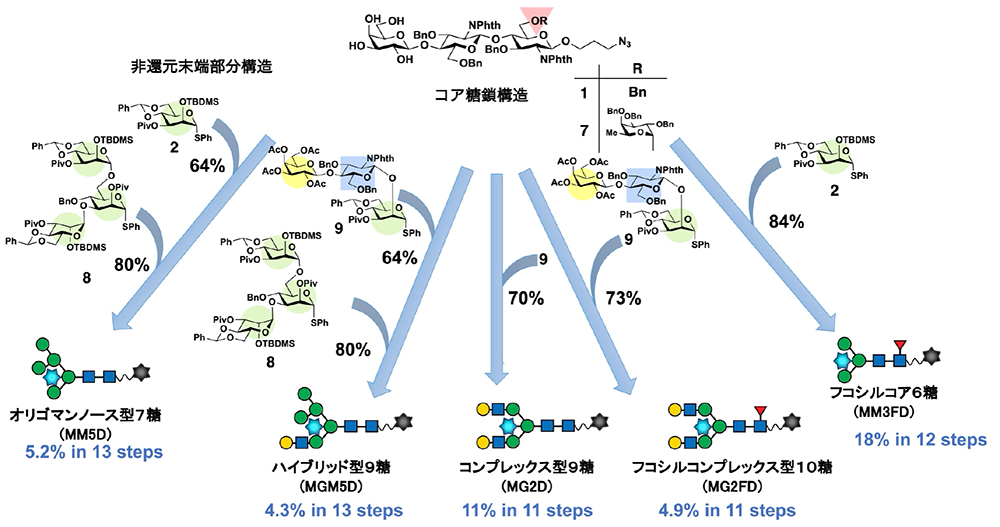
N-型糖鎖の共通コア構造をもとにデザインした5糖プローブMM3Dでは、極めて当たり前の結果であるが、非還元末端部分の糖鎖構造を見分けるENGaseの活性を検出することができなかった。したがって、種々のENGaseの活性を検出するためには、非還元末端部分の糖鎖構造が異なる糖鎖分子プローブが必要であった。そこで、非還元末端部分の糖鎖構造にオリゴマンノース型、ハイブリッド型およびコンプレックス型糖鎖を有するプローブと還元末端部分にフコース残基を有する糖鎖プローブ、合計6種類を化学合成した(図 5)。これら糖鎖骨格の構築は、基本的には5糖プローブの合成と同様におこなった。すなわち、3糖受容体1上のガラクトース残基のヒドロキシ基の反応性の差を利用して、非還元末端部分に特徴的な糖鎖構造の糖供与体を、ステップワイズにつなぎ合わせるブロック合成法により構築した。オリゴマンノース型7糖構造を有するMM5D18の場合は、マンノース供与体2をガラクトース残基のC-3位に導入後、分岐のマンノトリオース供与体8をC-6位に導入することで7糖骨格を構築した。ハイブリッド型9糖構造を有するMGM5D19は、コンプレックス型糖鎖に特徴的な3糖供与体9を、ガラクトース残基のC-3位に導入後、マンノトリオース供与体8をC-6位に反応させることで9糖骨格を構築した。一方、2本鎖コンプレックス型9糖MG2D20およびコアフコースを有するコンプレックス型10糖MG2FD20は、3糖受容体1もしくは4糖受容体7に対して、3糖供与体9を、1段階の反応で導入することで、対応する9糖骨格および10糖骨格をそれぞれ構築した。6糖MM3FD21は、コアフコース構造を有する4糖受容体7に対するマンノース供与体2の反応により構築した。これら糖鎖のガラクトース部分のC-2位とC-4位に脱離基を導入、C-4位のアジド化とC−2位の立体反転により、望むβ-マンノース残基を有する糖鎖へと変換、その後、脱保護およびDNP基とMANT基の導入を経て、糖鎖分子プローブへとそれぞれ導いた。
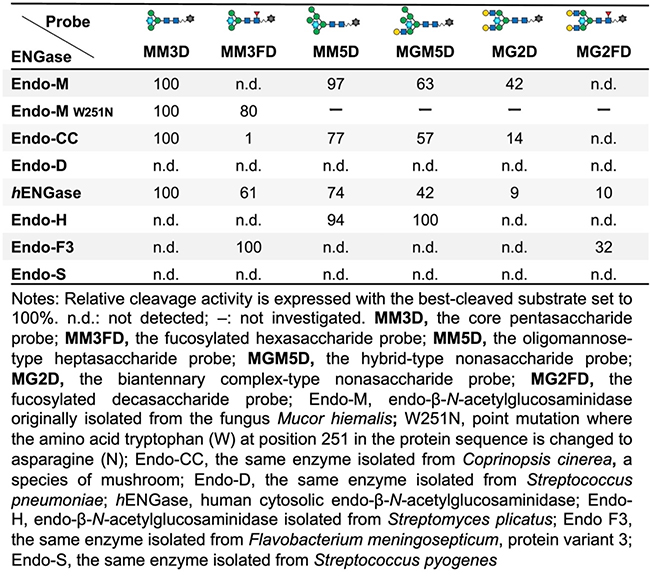
コア5糖プローブMM3Dに加え、フコシル化6糖プローブMM3FD、および非還元末端側の糖鎖構造が異なるオリゴマンノース型7糖プローブMM5D、ハイブリッド型9糖プローブMGM5D、2本鎖コンプレックス型9糖プローブMG2Dおよびフコシル化10糖鎖プローブMG2FDの6種類の糖鎖分子プローブを用いて、由来の異なるENGaseの活性を評価した。酵素反応を行う際、使用するENGaseの酵素濃度と基質濃度を一定にすることで、糖鎖構造の異なるプローブに対するENGaseの反応性の差異、すなわち、ENGaseの基質特異性を明らかにすることができる。そこで、市販されているENGaseとして、Endo-Mに加え、GH85ファミリーのEndo-CC、Endo-D、hENGaseおよびGH18ファミリーのEndo-H、Endo-F3、およびEndo-Sの活性評価を行った。具体的には、5 μMのプローブ溶液に対してENGaseをそれぞれ加え、マイクロプレートリーダーを用いて反応を追跡した。表 2に、各酵素によって最もよく切断されたプローブ基質に対する活性を100%として、その相対的な切断活性を示した。
Endo-Mは、コア5糖MM3Dとオリゴマンノース型7糖MM5Dをよく切断した。しかし、C−3位にコンプレックス型糖鎖構造を有するMGM5D、MG2Dに対する反応性は低くかった。一方、フコシル化されたMM3FDとMG2FDは全く加水分解しなかった。これらの結果は、これまでに報告されたEndo-Mの基質特異性を反映している22。Endo-Mの変異体であるEndo-M-W251N23は、MM3Dに加え、コアフコシル化された6糖MM3FDを基質とすることが確認された。Endo-CCはEndo-Mと同様に、コンプレックス型糖鎖と比較してオリゴマンノース型糖鎖を好む傾向が示された。また、Endo-Mとは異なり、コアフコシル化された6糖MM3FDもわずかながら切断することが示された。Endo-CCのコアフコシル化糖鎖に対する感受性は、黒河内らによっても報告されており24、我々のプローブによる解析結果はEndo-CCの基質特異性を反映していた。Endo-Dは、いずれの糖鎖プローブでも活性を検出することができず、先にも述べたが、バイセクトの位置に導入した蛍光基の影響で活性が評価できていなかったと思われる。hENGaseは、基質特異性が低く非還元末端部分の構造に依存せずに加水分解することが示された。平山らは、hENGaseの活性を、PA化糖鎖を用いて解析、hENGaseにはコアフコシル化糖鎖に対する切断活性を確認できていない1。我々の解析ではMM3FDとMG2FDで酵素活性が検出されていることより、詳細な解析は必要ではあるが、hENGaseの糖鎖認識には、糖鎖還元末端部分の環状構造が重要な役割を果たしていることが示唆された。
つづいて、GH18ファミリーのEndo-H、Endo-F3、およびEndo-Sについて評価した。その結果、Endo-Hは、オリゴマンノース型およびハイブリッド型糖鎖を基質とするのに対し、コンプレックス型糖鎖やコア5糖鎖およびフコシル化された糖鎖プローブには全く作用しなかった。一方、Endo-F3は、コアフコース残基がないプローブには作用せず、コアフコース残基を強く認識していることが示された。また、糖鎖構造が短いMM3FDには作用するが、糖鎖構造が伸長されたMG2FDに対する活性は低かった。このことより、Endo-F3は、還元末端側の糖鎖構造に対して、より親和性が高いことが示された。一方、抗体上の糖鎖に作用することが知られているEndo-Sの活性検出を検討したが、6種類すべてのプローブを基質とせず、活性を検出することができなかった。この理由として、Endo-Sには糖鎖認識部位のβ-マンノース残基付近にループ構造があることがX-線結晶構造解析により示されており25、FRET基質にするために導入した蛍光基の立体障害により、基質として認識されなかったものと考えている。
ENGaseを標的として、酵素反応を簡便かつリアルタイムで検出可能なFRET型の糖鎖分子プローブの開発を行った。糖鎖骨格部分の化学合成では、4箇所遊離のガラクトース残基上のヒドロキシ基に対する位置および立体選択的グリコシル化反応により、保護および脱保護工程を大幅に短縮した合成ルートを確立するとともに、β-ガラクース残基からβマンノース残基への立体反転反応により、効率的に糖鎖分子プローブへと導くことができた。我々が開発した糖鎖分子プローブを用いることで、ENGaseの活性が、マイクロプレートリーダを用いることで多サンプルかつ簡便に、リアルタイムで検出できることを確認した。したがって、網羅的な阻害剤の探索への応用も可能である。理化学研究所の鈴木先生らによってhENGaseが希少疾患NGLY1病に関係していることが示されており26,27、我々の方法により、NGLY1病治療薬となり得る新規ENGase阻害剤の探索に繋がることを期待する。
また、異なる糖鎖構造を有する糖鎖分子プローブを系統的に利用することで、ENGaseの基質特異性の解析が容易になった。詳細は避けるが、我々のプローブを利用することで、未同定のENGaseの活性検出と基質特異性解析が短時間で完了した。これらの糖鎖分子プローブを、多くのENGase研究者に積極的に活用していただき、新規ENGase探索研究や遺伝子改変による新たな基質特異性を付与したENGase変異体の取得など、産業上有用なENGaseの開発に貢献できれば幸いである。
最後に、現時点で活性検出ができなかったEndo-SやEndo-Dも、化学合成を駆使し、蛍光基の導入位置や糖鎖構造を精査することで、酵素活性が検出できることも確認している。今後は、多分岐コンプレックス型糖鎖構造を有するプローブや、FRETペアの変更による高感度化、細胞内ENGaseの活性検出が可能な分子プローブの開発など、化学合成でしか得られない糖鎖分子プローブにより、ENGaseの機能解明や探索研究に貢献すべく研究を展開していきたい。